你有没有观察过这么一个现象:
日常中大多数动物假如背部和腹部颜色不一样的话,它们多半是上面深色,下面浅色。
那么为什么会这样呢?这种配色怎么固定下来的?
胚胎发育的时候基因又是怎么知道哪边颜色该深一点,哪边颜色该浅一点呢?
我们就以这个举例子说一下吧。
我们现在假设远古的时候有一只奶牛猫,它叫做奥利:
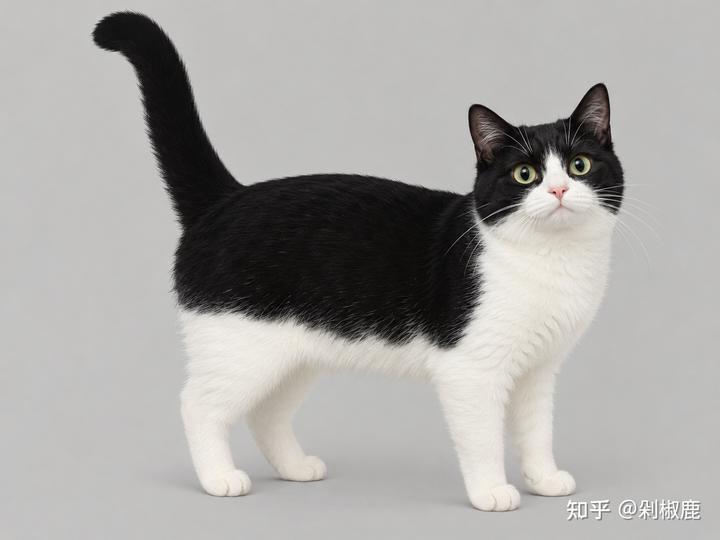
那时候毛发的颜色还是随机分配的。
它有几个兄弟分别是利奥、奥利奥、利奥利:
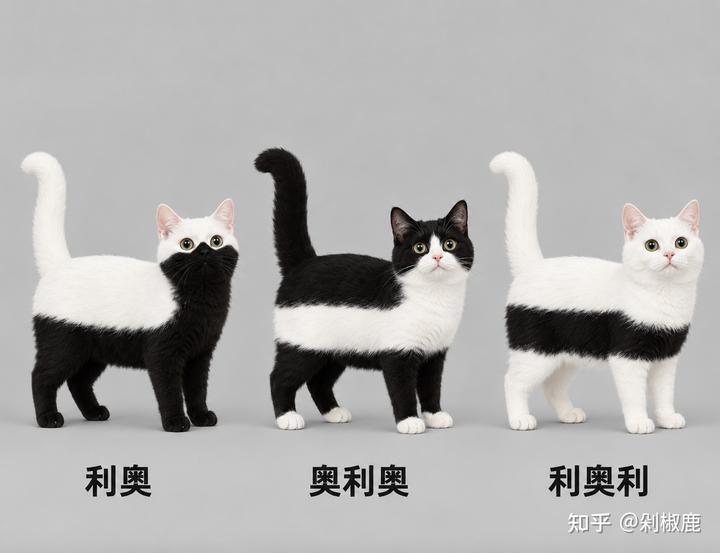
那么自然光线打在它们身上,它们就是这样的效果:
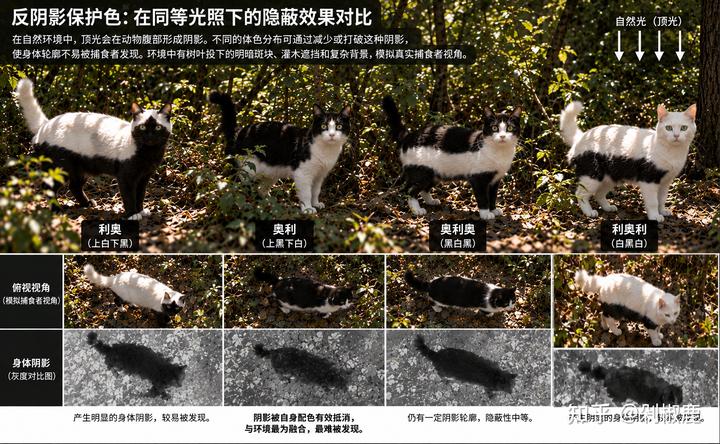
这个时候神奇的事情发生了,因为阳光是从顶部洒下来的,所以背面颜色比较深的话,可以有效的盖住自然的阴影。
而底部较浅,又可以间接消除自己的 3D 形状,看起来没有那么立体。
这就叫做反阴影保护色。
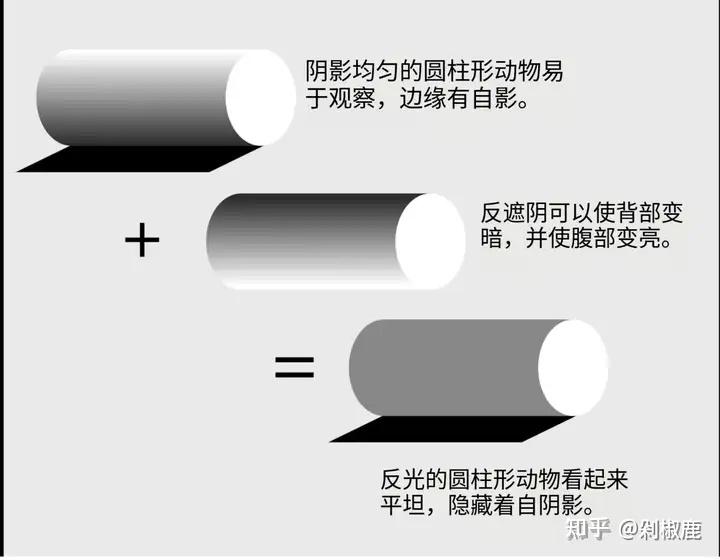
科学家用圆筒模拟了几种不同情况的保护色在不同光照条件下的表现。*1
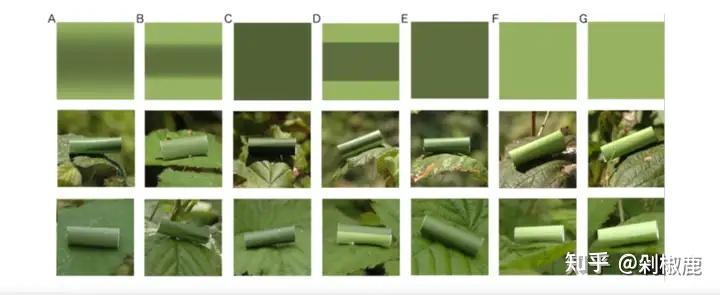
结果发现反阴影保护色确实能起到隐蔽的作用。
单色保护色圆筒 C 因为阴影过于明显,非常容易被天敌发现。
在间接光照条件下,反阴影效果最佳;而在直接光照条件下,当直接光照达到最大时,反阴影同样表现出色。
这些结果与先前的研究相吻合,表明在开阔地带或靠近赤道的物种中,反阴影保护色应用地更多,颜色变化也更明显。
反阴影保护色的进化意义在于它能够帮助动物更好地融入周围环境,从而提高生存机会。
所以奥利配色能更多的存活下来,并产生后代。
多代以后,基因觉得这个配色非常好用,干脆决定给它加个“基因锁”(生物学没这说法,这里是方便理解),不能随意改动这类毛色基因,让这类配色固定下来。
当然这里用猫解释是为了方便你理解,这可不是从猫猫开始选配的颜色。
实际上至少在约 3 亿年前的石炭纪,脊椎动物已经在使用这种上深下浅的配色。
所以你会看见哺乳类的动物,同一种往往颜色比较接近,看起来都差不多。
这样后代就都是上面深下面浅的保护色,有利于种群数量的维持和增长。
利奥和奥利奥等等不利于种群的颜色不会保留下来。
这叫做纯化选择。
具体是怎么操作的呢?
比如在哺乳动物里,控制动物皮毛颜色的关键基因之一是黑皮质素 -1 受体(Mc1R)基因。
该基因编码的蛋白可启动激素结合活性和黑皮质素受体活性,产生黑色素表达。
你可以把它看成墨水。
那么我们在需要深颜色的地方多表达 Mc1R 基因,在需要浅颜色的地方提高 ASIP 信号,抑制 Mc1R 基因,就可以实现不同颜色的效果。
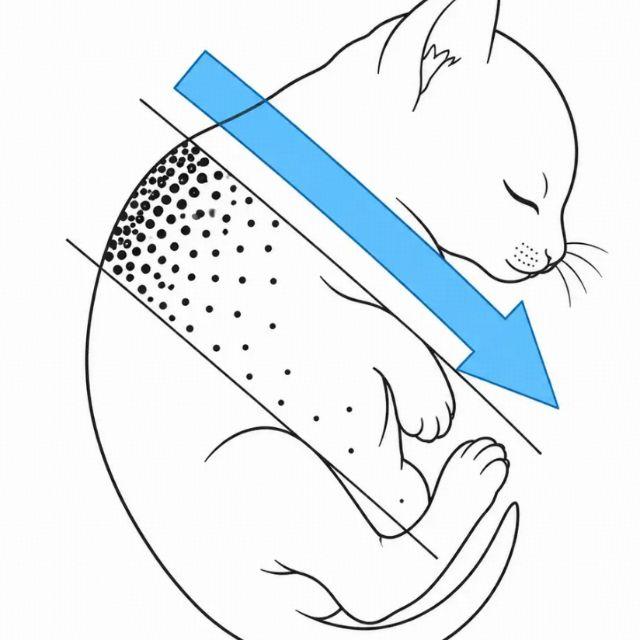
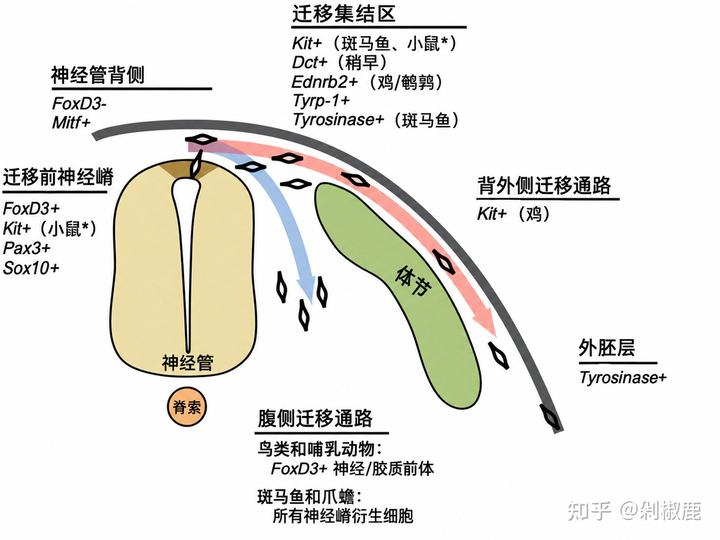
为了给这个配色加上双重保险,黑色素细胞迁徙的时候就应该从背侧往腹部迁徙:
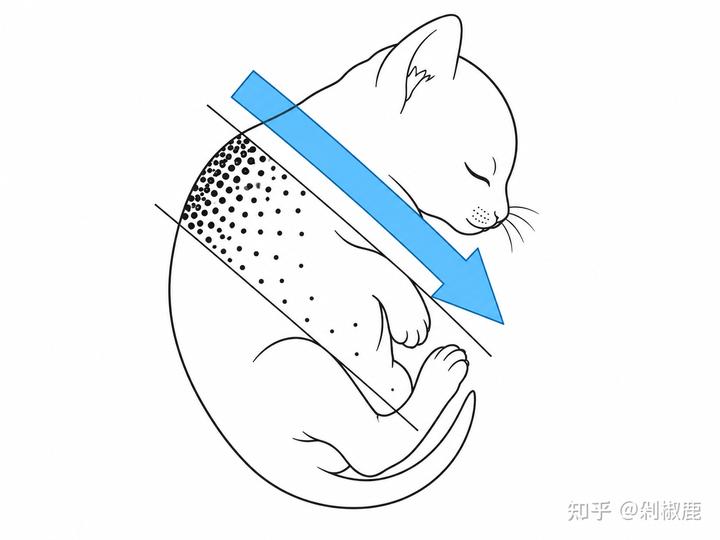
这样即便发育的时候出现了问题,黑色素细胞没有成功走完所有的路,也至少保证背部是有深色的。
不仅是猫,很多动物机理都是一样的。
如果色素细胞由于各种原因没能成功的完成从背部到脚迁徙全过程(比如奶牛猫的 KIT–KITL 通路的影响),会出现局部缺乏黑色素细胞的白斑现象,我们就会看见黑猫白蹄子:
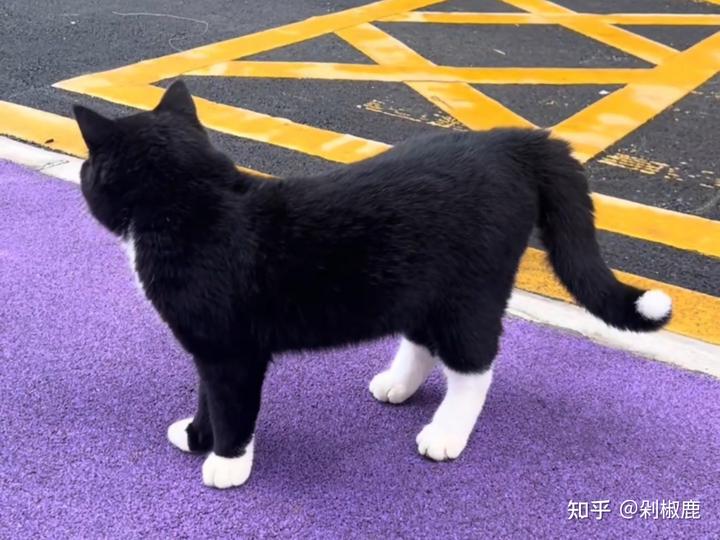
但是你却很少能看见白猫黑蹄。
因为假如一只猫整体因为白斑机制而大面积缺乏黑色素细胞,那么想让只有脚的部分重新变黑,就要求黑色素细胞从背部出发,一点都没留下痕迹,恰好穿过或绕过大片无色区域,最终只在脚上成功定殖。
这种发育空间模式相对来说比较难实现。
这也就是为什么奥利这么多,却看不见利奥的原因。
当然,有很少部分猫基因突变获得了蜜獾那种上面白下面黑的配色也是有可能的。这个不在常规猫的讨论范围。
不过暹罗猫等重点色猫常常是身体很浅、耳朵和四肢末端很深。
这不是迁移机制出了问题,而是它们的深浅是由温度敏感的酪氨酸酶(TYR)造成的,因为身体末端温度较低,黑色素合成反而更多,所以会天然出现浅身体加上黑脚。
而驯化的动物,生存压力会减小,毛色变异的个体也不会被人类淘汰因此会留下后代。
相当于解开了基因锁,会出现白斑、花斑、四肢白袜子等驯化综合征,也就是可以解锁各种皮肤了。
这是俄罗斯驯化的狐狸爆出来的各种花色:
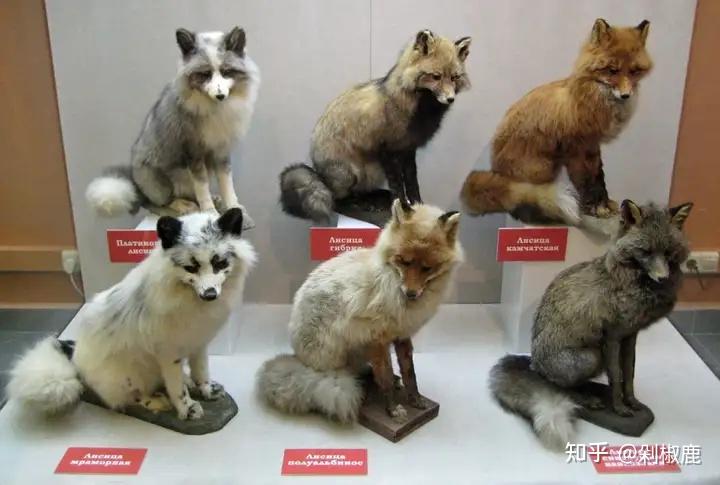
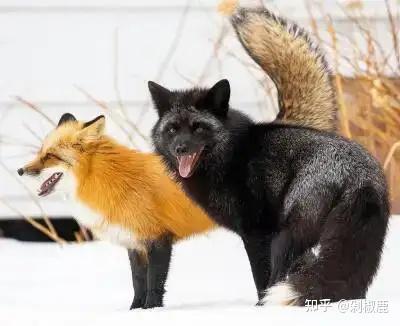
他们的野生祖先红狐往往只有标准橘黄色,变异虽然存在,但总体来说很少。
变异的黑色银狐(控制黑色素的 Mc1R 基因变异)和白化的红狐都是非常罕见的。
好了。
现在你已经学会用基因表达、抑制和浓度梯度来改变毛发颜色了,下面来玩点更大的吧。
给你个两侧对称动物的最后一个共同祖先:Urbilateria,你可以简单叫他乌尔。
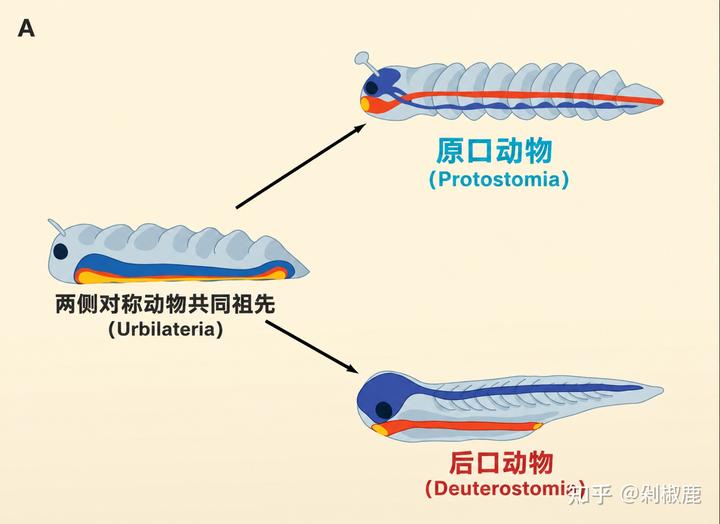
乌尔没有确切的化石证据,这里我们把它简化一下,排除目前学术界的所有不确定性,假设它是
一条小小的软软的、没有硬壳、没有手脚、贴着海底爬行像一节肠子一样的扁长小虫。
它只有一个口,进出食物都靠这个口。
它发育的初期阶段形成形成原肠时,会出现一个开口,这个开口叫做原口。
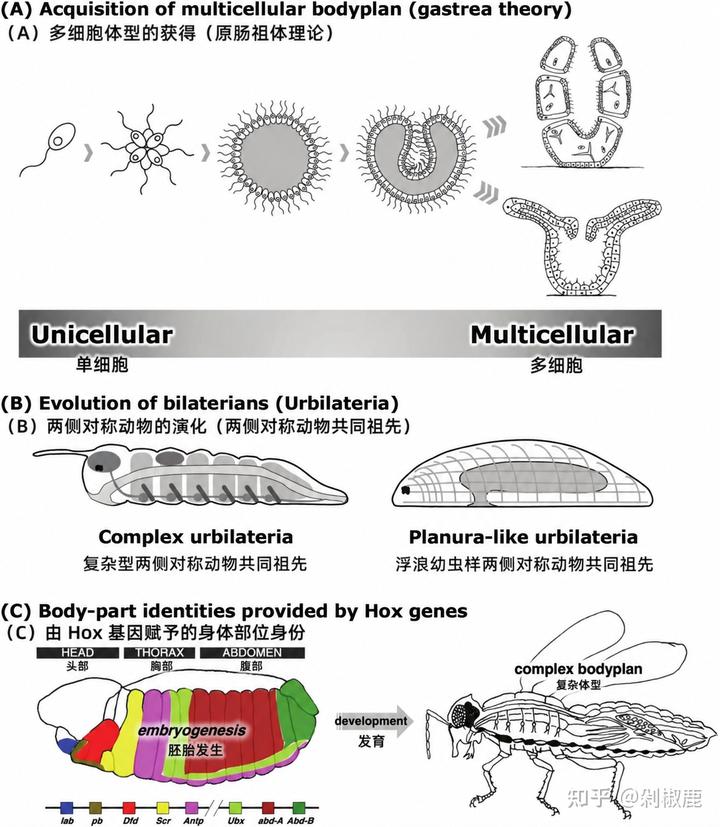
它的孙辈们大多数都有嘴和肛门。
假如原口发育成嘴,我们就叫他原口动物。
绝大多数无脊椎动物都是原口动物,比如昆虫、蜘蛛、螃蟹、章鱼、蜗牛、蚯蚓、线虫等。
原口发育成肛门,我们就叫他后口动物。
包括咱们脊索动物(内含脊椎动物)、海星海胆等棘皮动物 ,还有半索动物等。
(当然实际情况复杂很多,这里只是非常简化的描述)
神奇的是,发育调控的工具,比如 Pax6、Hox、BMP、Wnt、Notch 等基因,其实已经包含在乌尔老祖先的安装包里了。
拿 Hox 基因举例,这类基因是一类形态发育地图。
这套基因人类有、章鱼有、连果蝇也都有。
果蝇 Hox 基因的Ubx 主要参与第三胸节 T3 形态调节。
正常果蝇第二胸节 T2 长翅膀,第三胸节 T3 长平衡棒。
如果我们捣乱给它 Ubx 基因敲掉,那么 T3 就会沿袭 T2 的形态,不长平衡棒改为长出第二对翅膀:
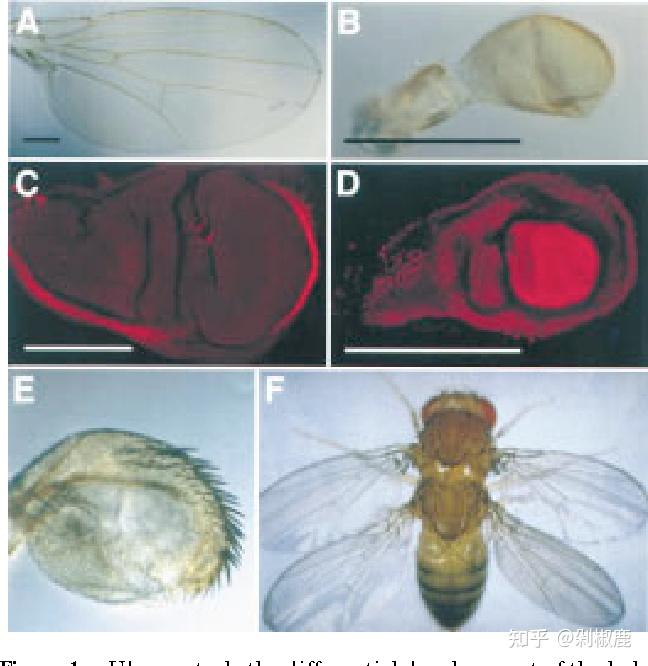
上图就是科学家捣鼓出来的两对翅膀果蝇。
你看这工具多好用啊,指哪打哪。
现在有了这些好用的工具,那么它们要什么时候,在哪里发挥作用呢?
现在我们把这些工具开始运用到一个受精卵上面。
受精卵是一个装了一套人类基因组的细胞,它刚开始的目的是疯狂复制。
1,2,4,8,16……
这时候所有的细胞都安装的同一套操作系统(人类基因组)。
刚开始分裂的受精卵细胞具有一定的全能性,既能形成胚胎本体,也能形成胎盘等胚外组织,并最终有潜力形成完整个体,分开得越早的胚胎越能形成两个具有独立胎盘的双胞胎。
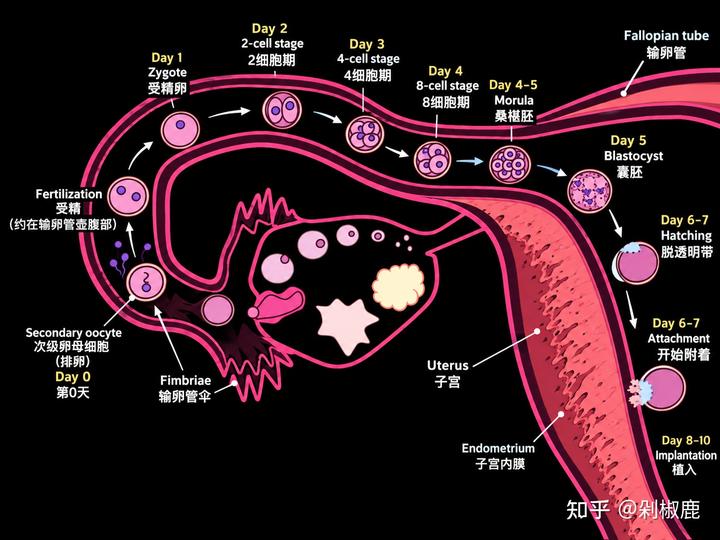
但是从八细胞阶段开始,细胞的命运就会慢慢有所不同。
这个阶段会发生一个很重要的胚胎致密化过程:
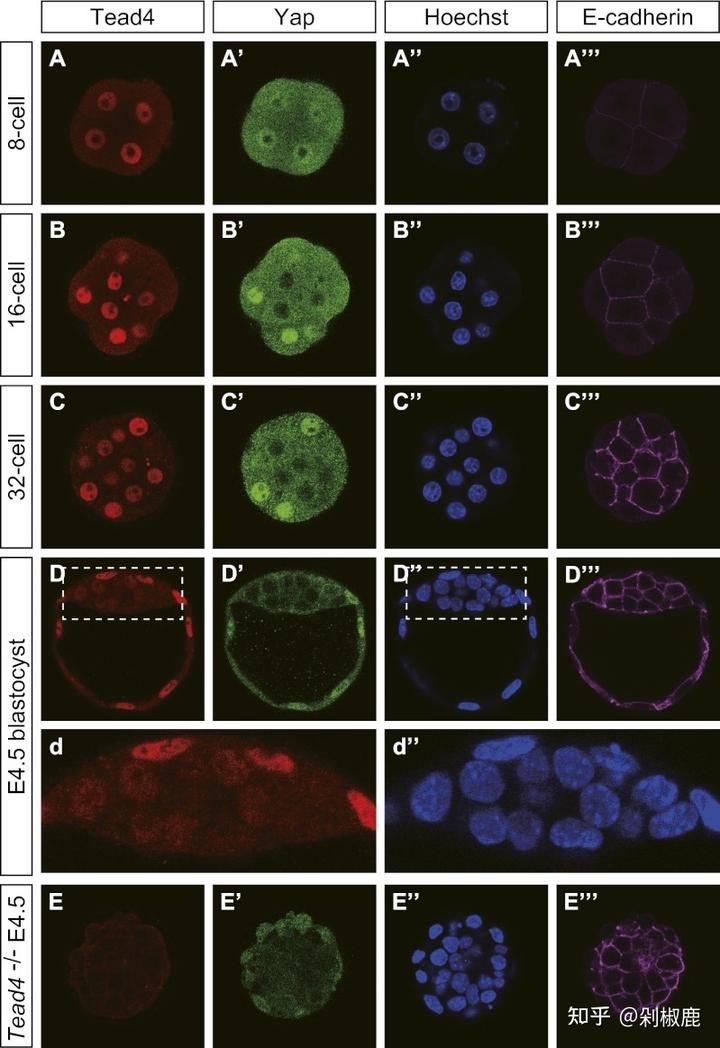
可以看见部分细胞被压得严严实实的,这个过程相对比较随机,谁去外面谁去里面是根据当时胚胎的情况自组织自发形成的。
但是一旦有了外层细胞和内层细胞的区别,后面的事情就不一样了。
外层的细胞膜没有其他细胞挤压,具有顶端—基底极性,内层细胞被包进内部后失去这个顶端区域,因此在这一阶段相对缺乏这种极性。
这种位置和极性的差异,进一步造成细胞内信号通路活性不同,并最终启动不同的基因表达程序。
随着细胞继续分裂增多,这种最初很细微的差别被一轮轮信号反馈不断放大:有些细胞留在胚胎外侧,形成滋养层,负责跟母体对接。
有些接着进入内细胞团。
内细胞团又进一步分成上胚层和下胚层。
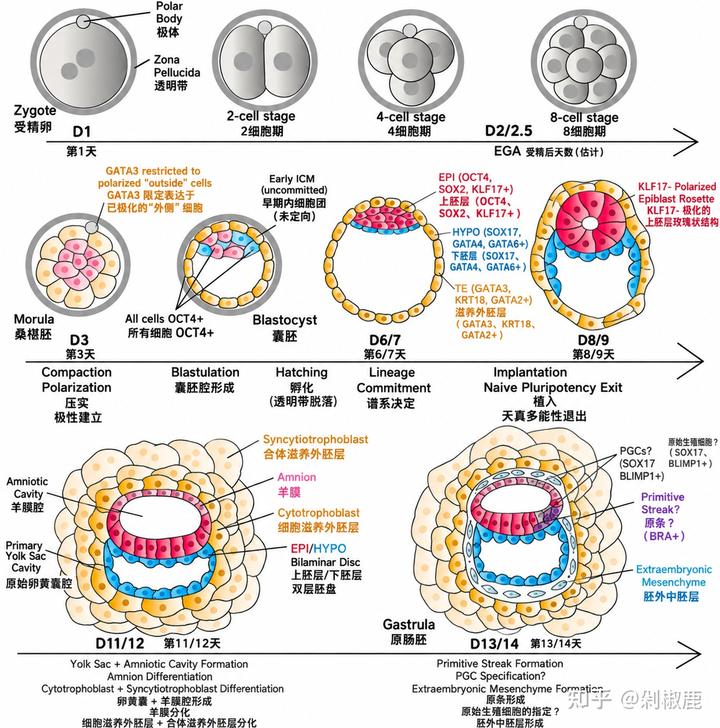
到了第三周左右,上胚层中出现原条,大量细胞开始通过原条向内部迁移并重新排列。
最先进入的细胞形成内胚层,随后进入的形成中胚层,留在表面的则成为外胚层。
这个大规模的细胞迁移和命运重排过程,就是“原肠运动”。
原肠运动就像一场大考试,统筹的结果是使得原本相对简单的胚盘被重新组织成具有三大胚层的原肠胚。
到此,细胞的第一志愿就被决定了。
外胚层,主要负责信息、感知和外部界面,后来形成神经系统、表皮等结构。
中胚层负责结构、动力和运输,后来形成肌肉、骨骼、结缔组织、心血管系统、血液以及部分泌尿生殖系统。
内胚层更像内部处理和物质交换部门,后来形成消化道和呼吸道的上皮,并参与肝脏、胰腺等器官的形成。
事情到这个程度你会发现,有些东西并不是一开始就决定好的。
而是由细胞自组织产生的。
到了一定阶段,其他细胞会推着你走,然后分成不同层级后会自然的出现差异,这时候各种调控的基因才会根据差异开始拿着图纸施工。
比如 2024 年研究发现胚胎后端早期是怎么形成的?
首先出现的是一些略显随机的 NODAL(区域规划信号蛋白)活性差异。
随后出现几个零散的 WNT(一类规划和指令信号蛋白,负责开发后端)高活性区域;
细胞又通过变钙黏蛋白(负责给细胞涂胶水)改变黏附能力和移动位置,把这些零散区域逐渐整理到一起。
最后才形成一个稳定的具有高 WNT 活性的后端。
这其实特别反直觉,组织不是一开始决定你去当肛门,而是先根据随机的活性差异,慢慢把前端和后端区域做出来。
讲这么多,你应该已经摸透这个胚胎发育的套路了。
它不是一个每块积木搭在哪里都给你规定好的乐高图纸,而是具有一定的随机性,很多细胞是一边移动,一边把坐标系做出来。
然后负责调控的基因再根据一些已经产生的差异,进一步加工。
胚胎早期建立的后端,后来主要对应身体下部分区域,腿、骨盆、后肠和肛门附近结构都在这一带逐渐形成。
胚胎早期建立的前端,后来主要对应身体的头侧和躯干上部区域,头部、脑、面部、颈部以及前肠和心脏附近结构都在这一带逐渐形成。
而且前面提到这些调控的通路是非常古老的,可能是在乌尔那个时期就已经打包好了大部分。
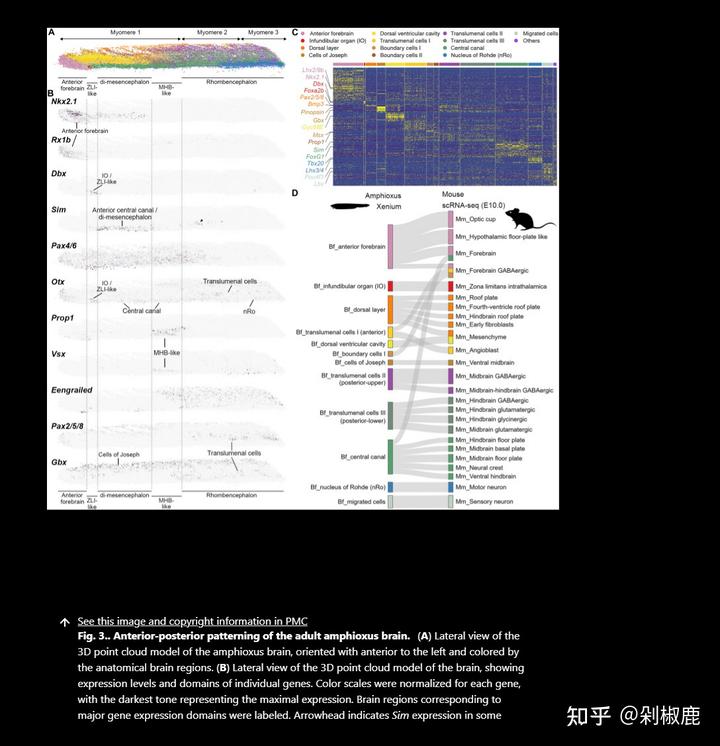
这是今年 7 月最新发表的论文,这张图说的是文昌鱼没有真正意义上的大脑,但当研究者把它神经管里的基因逐个点亮时,却发现脊椎动物大脑的基本城市规划已经在文昌鱼体内隐约存在:
前端是什么区、中间在哪里设边界、后面是什么区,早在复杂大脑出现之前就已经画好了。
后面不过是把信号通路搞复杂一点,这里浓度高了,就多修一堵墙,那里浓度低了,就抑制水渠的边界。
慢慢的就把一个简陋的漏水破平房,修成了带喷水池的超大型高层小区。
回到题目开头,眼睛是怎么形成的?
你说眼睛对视的时候为什么要么就互相吸引,要么互相排斥?
因为眼睛刚形成的时候不是一个个眼球,而是 eye field,是一个场(bushi)。
最开始形成的是前部神经板上一片形态上不起眼、但已经启动 RAX、PAX6、SIX3、LHX2 等调控网络的单一眼区。
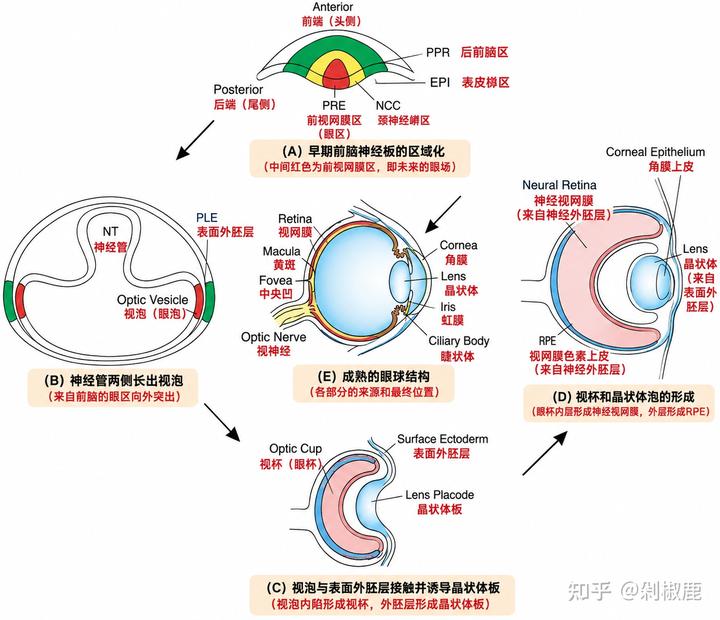
随后胚胎中线释放 SHH 等信号,让中间那部分细胞不再继续干搭建眼球的活,而逐步转向完成腹侧前脑 / 下丘脑的身份转变。
这样原本相对连续的单一眼区,会从中间被劈开,分成左右两个区域形成双侧眼区。
前脑两侧眼区再向外膨出形成视泡,视泡与表面外胚层相互诱导。
视泡远端内陷形成双层眼杯,其内层分化为视网膜,表面外胚层则内陷形成晶状体板并进一步发育为晶状体。
这里你会发现一个问题,要是没劈开呢?
这就会变成独眼羊这样的怪物:
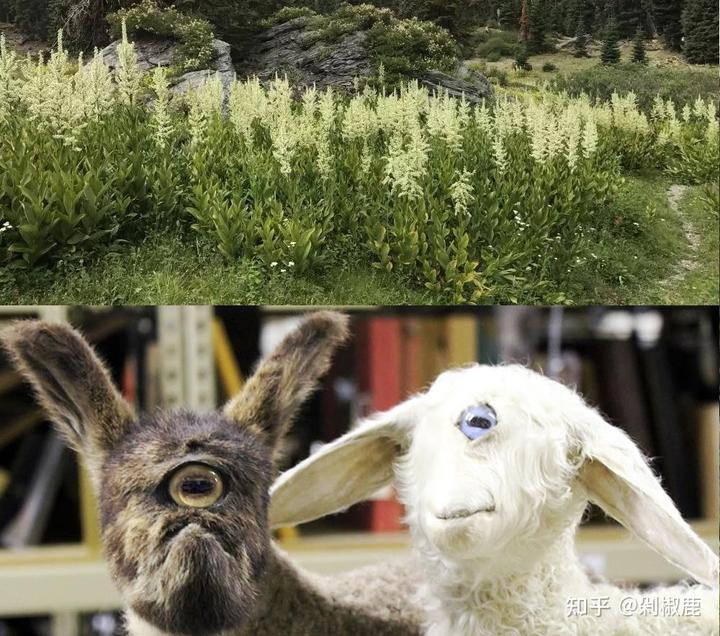
美国西部有一种恶魔般的植物叫做加州藜芦(图上部分)。
这种草含有一种甾体生物碱叫做环巴胺,环巴胺会抑制 Hedgehog/SHH (即刚才提到的中线信号)于是眼区一分为二失败,羔羊就可能出现独眼、鼻部异常,再加上单一眼区还参与了脑的形成,所以这些羊也会有严重的全前脑畸形。
由此可见,维持胚胎发育阶段的各种信号通路正常运转非常重要,稍微不慎就可能导致细胞拿错图纸,开始造弗兰肯斯坦。
所以怀孕期间一定不要随便乱吃不认识的东西啊~