
这句话倒是个好比喻。
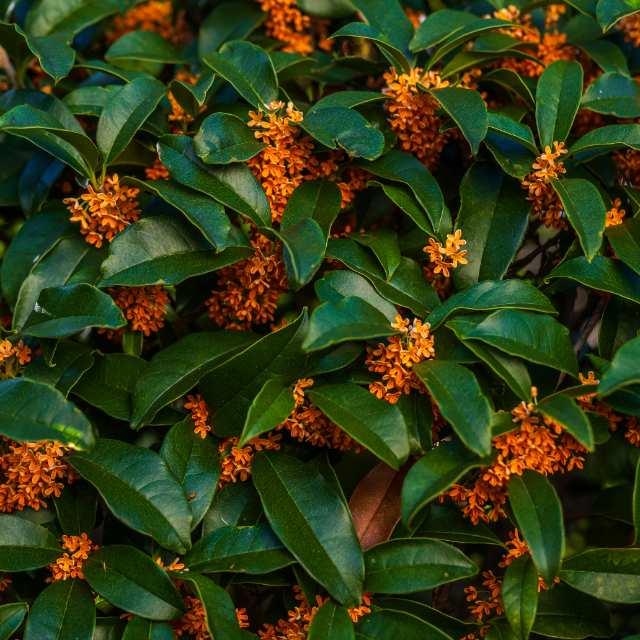
桂花香不是真的非牛顿流体,但是越用力闻气味越淡,越不用力闻气味越浓,这说法确实有道理。
(太长不想看的话,建议直接跳到第四节)
一、先说说非牛顿流体吧
流体有个朴素性质,给它剪切力,它会流动。
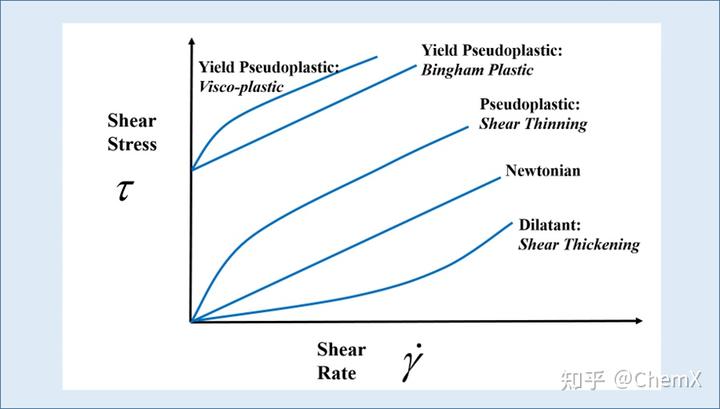
像水、空气这类流体,剪切应力和剪切速率成正比,黏度是常数,搅快搅慢,稠度不变。这叫牛顿流体。
而非牛顿流体就是不满足这个线性关系的一类[1],常见的有三种:
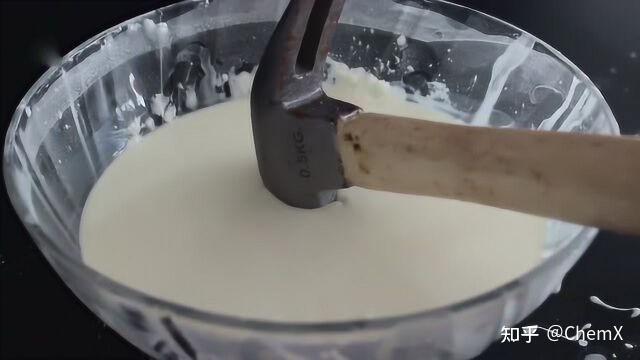
● 剪切增稠:越搅越稠。玉米淀粉加水,慢慢搅是液体,猛地捶一拳,硬得像块橡胶。
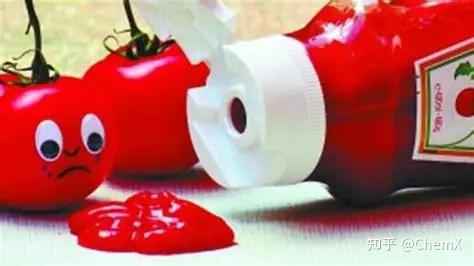
● 剪切变稀:越搅越稀。番茄酱、油漆、血液都算,放着不动很稠,一搅就顺了。
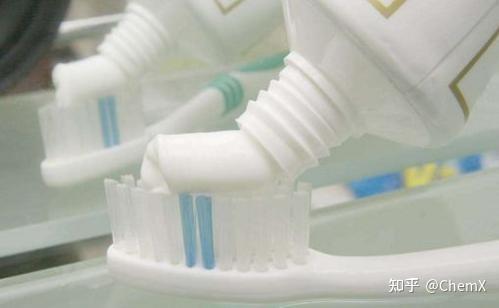
● 触变:搅过之后变稀,静置一段时间又稠回去。酸奶、凝胶、牙膏是这种脾气。
这三种说的都是材料本身怎么流动。
桂花香有材料吗?
没有。
它是空气里的痕量分子,浓度低到用 ppm 甚至 ppb 算。
你可以说承载它的空气是流体,但“桂花香”本身没有黏度、没有本构关系,远远谈不上牛顿还是非牛顿。
闻它的时候,也没有施加可控的剪切,你只是在吸气。
所以这句话是个范畴错误,把“一种感觉”安到了“一类材料”头上。
然后用这个材料的性质来比喻这个感觉。
二、真实的桂花香到底是什么呢?
桂花香不是某一种化合物,是一张挥发物谱。
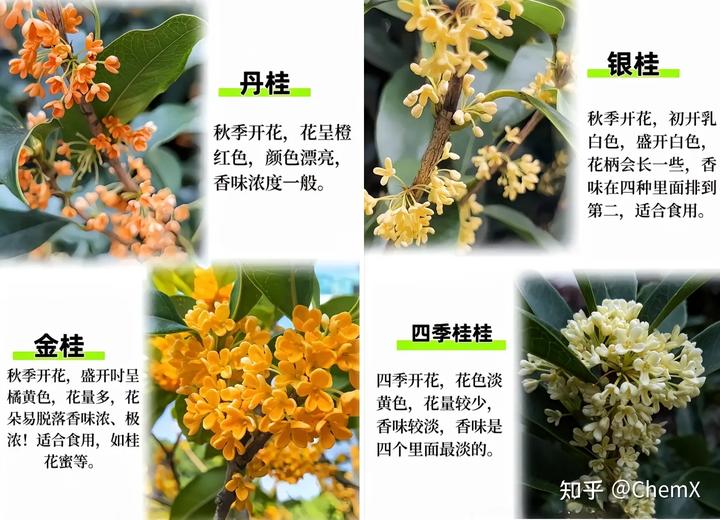
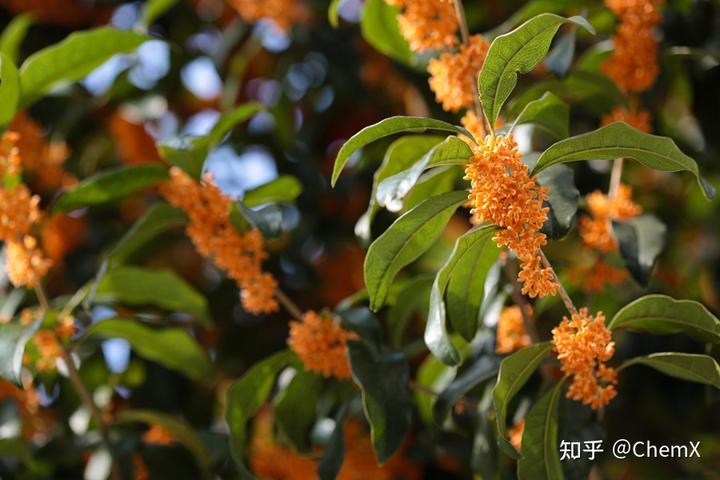
鉴定出的成分至少有二十几种,贡献最大的几类里,一头是β- 紫罗兰酮,带紫罗兰、木头、干果的底子;另一头是芳樟醇,偏花香、清甜,是桂花特征香气的主力[2][3]。
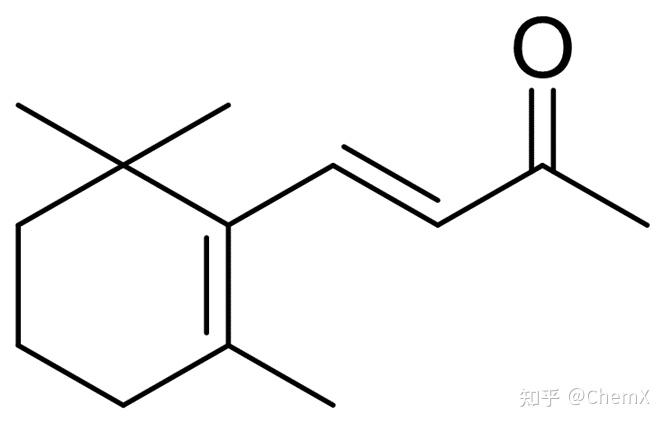
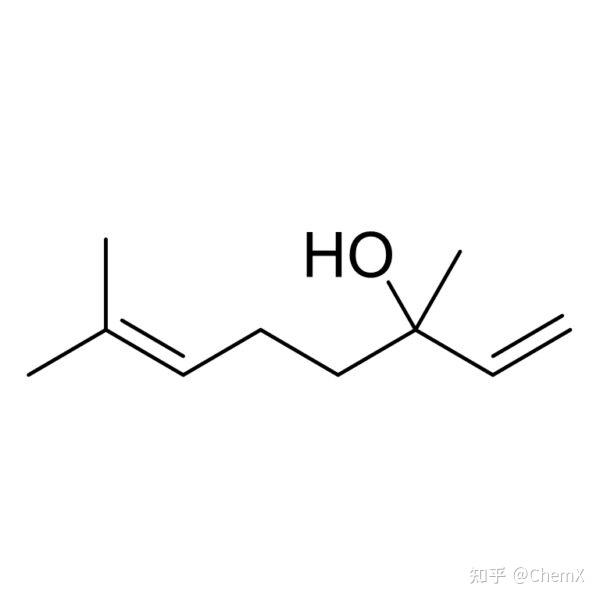
桂花的特别之处不是独有它们,而是把这两种分子按一个讨喜的比例混在一起。
这个比例会随品种、花期、天气变,甚至摘下来放多久都变。桂花净油成分的研究里发现,长链酯会改变香气化合物在溶液中的释放行为[4]。
另外,金桂、银桂、丹桂,香气配比不一样,闻起来也不一样[5]。
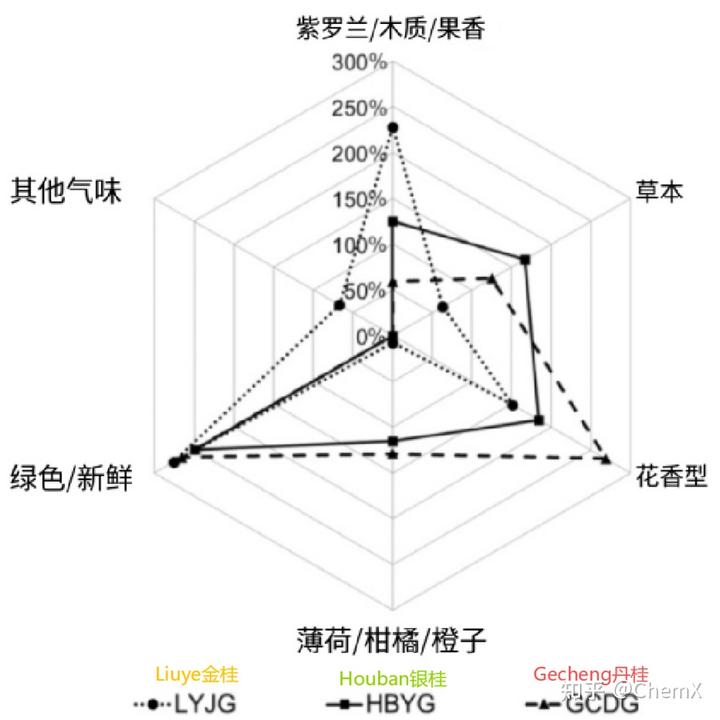
你闻到的不是一张固定配方,是一个一直在动的平衡。
三、你的鼻子是怎么闻到它的?
香气分子从花瓣挥发出来,跟着空气进鼻子。
但进鼻子不等于闻到。
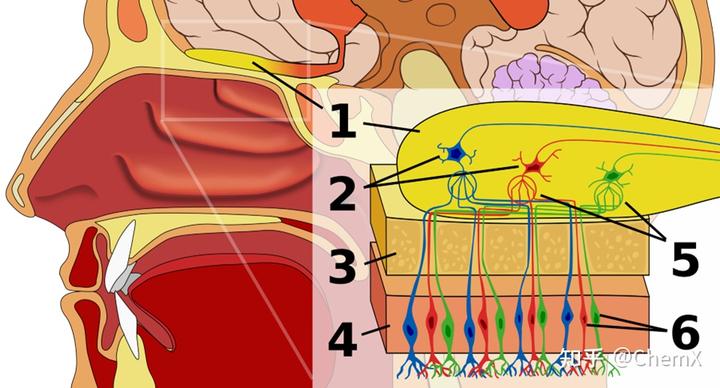
鼻腔里有鼻甲、有弯道,大部分气流走中下鼻道;能到达鼻腔顶部那条窄缝,也就是嗅裂,的气流只占一部分。嗅裂后面是嗅上皮,一小块传感器地毯,嗅感觉神经元(OSN)住在这里。
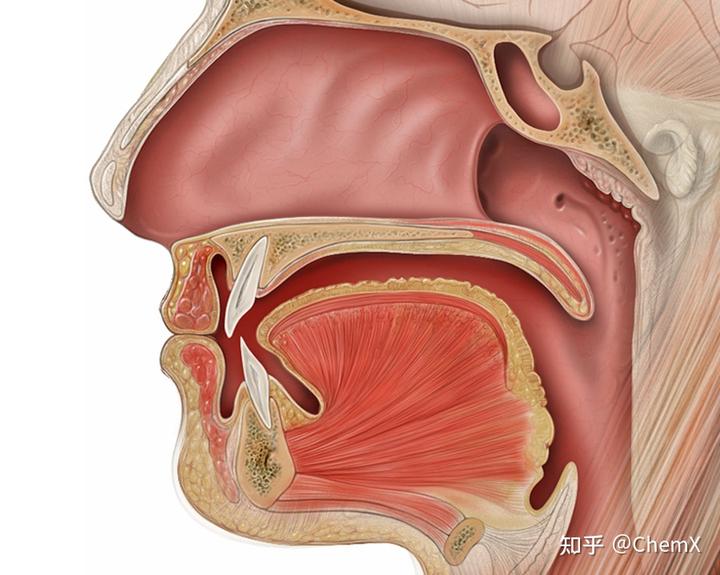
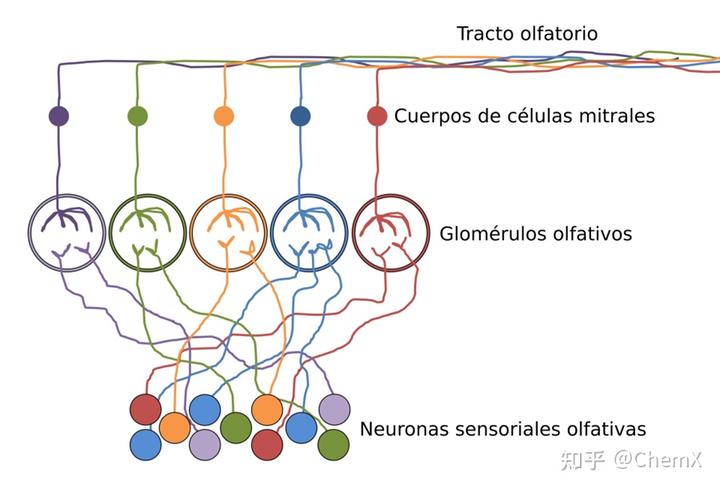
嗅感觉神经元上的纤毛伸进覆盖嗅上皮的黏液层。
气味分子先溶进黏液,再碰到纤毛上的嗅觉受体。这些受体是 GPCR(G 蛋白偶联受体),激活后拉起 cAMP 第二信使,打开 CNG 通道,让 Ca²⁺内流,神经元就放电了[6]。
信号顺着嗅神经进嗅球,再往梨状皮层走;它不经过丘脑,而是直接投到皮层。
还有个容易忽略的点,鼻子不是被动接收,它在主动采样。
嗅吸的深浅、长短、波形,会改变气流怎么走、气味沉在哪儿,大脑还会根据闻到的气味特征,实时调整下一次嗅吸的波形[7][8]。
吸一口气,其实是一次带反馈的主动探测。
四、为啥桂花香越用力闻,越淡呢?
前面,闲话铺垫好了,现在再回来解释下这个问题。
1、受体先麻了
在嗅上皮受体被持续刺激,不会一直满负荷工作,它会脱敏。
所以就会产生类似感官过载的效果,就闻不到香味了。
Ca²⁺进来后会做负反馈,相关激酶也会参与脱敏。Zufall 和 Leinders-Zufall 的综述里说,脊椎动物嗅感觉神经元里至少同时存在两种快速适应和一种持续适应,起始和恢复的时间进程都不一样[6]。Munger 等人在小鼠里敲掉 CNGA4 亚基,Ca²⁺- 钙调蛋白依赖的适应就出了问题[9]。
说人话就是,气味受体不是麦克风,相当于是带自动增益控制的麦克风。 声音一直大,它自己会把音量压低了。
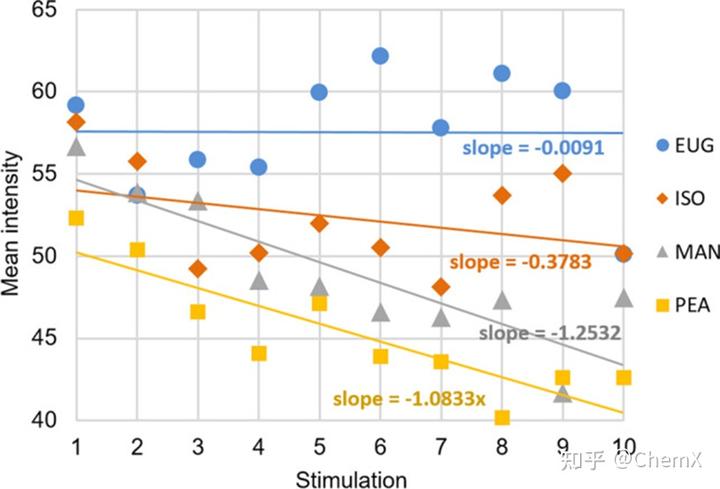
在心理物理实验里,这个现象表现为阈值升高、对阈上刺激反应下降,而幅度和恢复速度取决于浓度与暴露时间[10]。
所以闻麻了不是错觉。
古人所说的,“如入鲍鱼之肆,久而不闻其臭。”也是这个道理。
但是这个解释不了全部,如果只是受体麻了,那换个鼻孔应该还能闻到啊?
2、大脑也在把音量调小
Dalton 的综述里总结过一个实验:只刺激一侧鼻孔,两侧都会适应,同侧更明显、恢复更慢;重复刺激后,外周反应下降较小,主观强度却下降很多[6]。
适应不只在受体,中枢也在参与。
2022 年一项人类研究:35 名受试者,4 种气味,每种重复 10 次,记录嗅上皮的电生理反应。嗅上皮的电信号振幅在 10 次重复里没有显著下降,但部分气味的主观强度评分下降了[9]。作者自己的结论很谨慎:没有确立明确的外周适应,但不能排除。
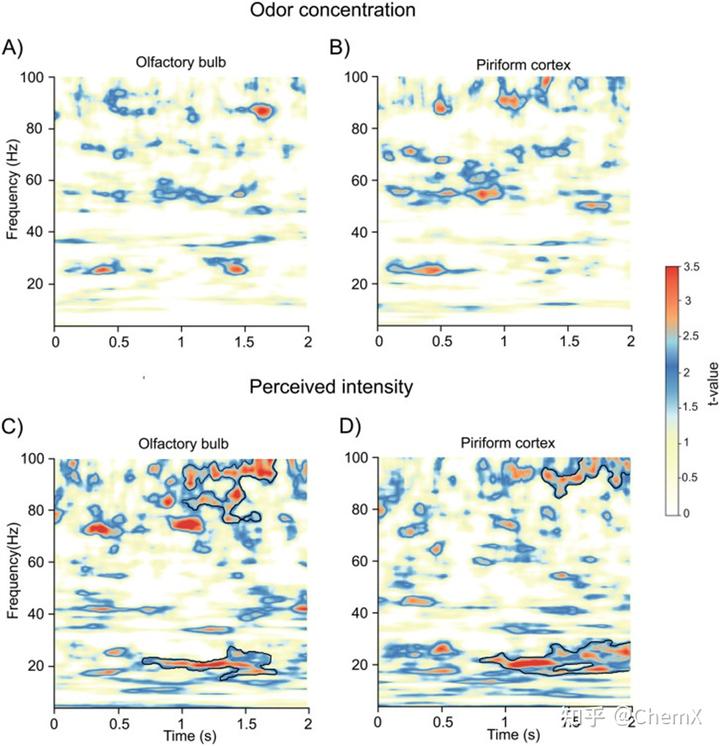
今年的一项人类研究又推了一步:嗅球和梨状皮层的振荡活动,主要编码的是主观感知强度,而不是物理浓度;嗅球把强度信息往上送,皮层再用β振荡往回调制嗅球,形成一个动态更新的环路[11]。
这项研究提示,你闻到的“浓淡”更像是大脑对浓度的解释,不是浓度的直接读数。
神奇吧,即使外界的桂花再浓,桂花就在你跟前,你的大脑可能觉得它还很淡。。。
“越闻越淡”可以发生在浓度几乎没变的情况下,变的是增益,不是输入。
3、吸进去多少,和闻到多少,不是一回事
鼻腔的气流分配、嗅裂形状、黏液层的吸附和清除,都会影响到达受体的分子量。计算流体力学的研究显示,嗅裂的气流量、流速、气流比和嗅觉功能高度相关[12][13][14];在犬身上,主动嗅吸比安静呼吸多送大约 2.5 倍空气到嗅隐窝,气味摄取多 2.5 到 3 倍[15]。
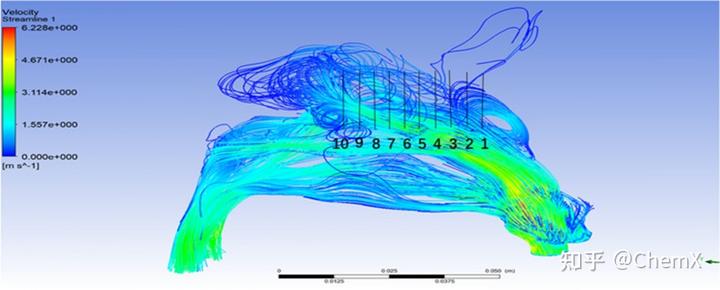
所以主动嗅不是白费,它确实增加了采样。
但人类有一个反直觉的结果。上世纪 70 年代,Teghtsoonian 等人让受试者用两种流速嗅吸,一种约是另一种的两倍,再对正丁醇和乙酸正戊酯做强度估计。结果,自控流速对气味强度没有影响[16]。
作者提出气味恒常性的解释:大脑把“到达受体的速率”和“嗅吸力度”合起来,得出一个稳定的强度判断。
另外,小鼠实验也支持这个思路,嗅吸波形会改变嗅球 MT 细胞的响应,但用鼻腔内浓度动力学模型校正后,这种差异可以被消除,浓度解码反而更好[17]。外周在变,中枢在却在折算。
正常嗅吸范围内,大脑会把“吸得猛”补偿掉,你吸得再猛,也是白费力了,只有环境风、气味羽流、鼻腔结构异常这些层面,传质才当主角。
by the way,再理解了为啥中学化学老师说,闻药品的气味要用扇闻法了吧,轻轻扇动气流,就能闻到味道。
如果你猛吸一口气体的话,你大脑里面的感觉说不定和轻轻扇闻的方式要差不多。
但是你实际上猛吸了更多进去了,如果药品有毒的话,那危险性就更大了。
4、气味是一团一团来的
“不找它,风一吹就扑进鼻子里”,这句话其实很准。
真实世界的气味不是一团均匀的云。
湍流把它撕成一股一股的“羽流”,浓度随时间剧烈波动。小鼠实验里,气味以离散脉冲呈现,动物对吸入相位到达的脉冲赋予更高权重;前梨状皮层的神经元对每个脉冲的响应短暂而随机,皮层本身没有表现出累积[18]。
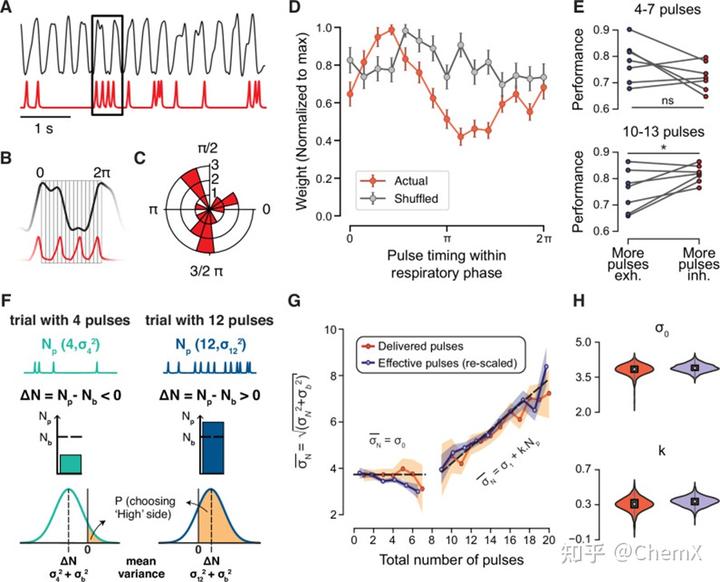
至少在小鼠实验里,间歇暴露比持续暴露更难适应。你走过去闻到的是新的一团,停下来猛吸,吸到的是同一团。
另一个因素是,“变化”本身就是强刺激:嗅觉系统对变化做出反应,而不是对持续的背景做出反应[10]。
风一吹,浓度变了,系统就能立刻捕捉到。
所以“不找它反而闻到”不是玄学。
一部分是物理原因,你刚好遇上一团新气味,一部分是生理原因,你还没对那一团产生适应。
5、你在找它,这件事本身就有影响(你在凝视黑洞,黑洞也在凝视你)
最后一层,是注意力。
这不是玄学。
小鼠实验里,基底前脑的胆碱能神经元通过嗅球内的抑制性多巴胺短轴细胞,实现对气味处理的注意控制,当注意线索一到,嗅球对奖赏相关气味的反应会增强[19]。
人身上也有类似现象,36 名受试者在饥饿时对食物气味的“污染敏感度”更高[20]。
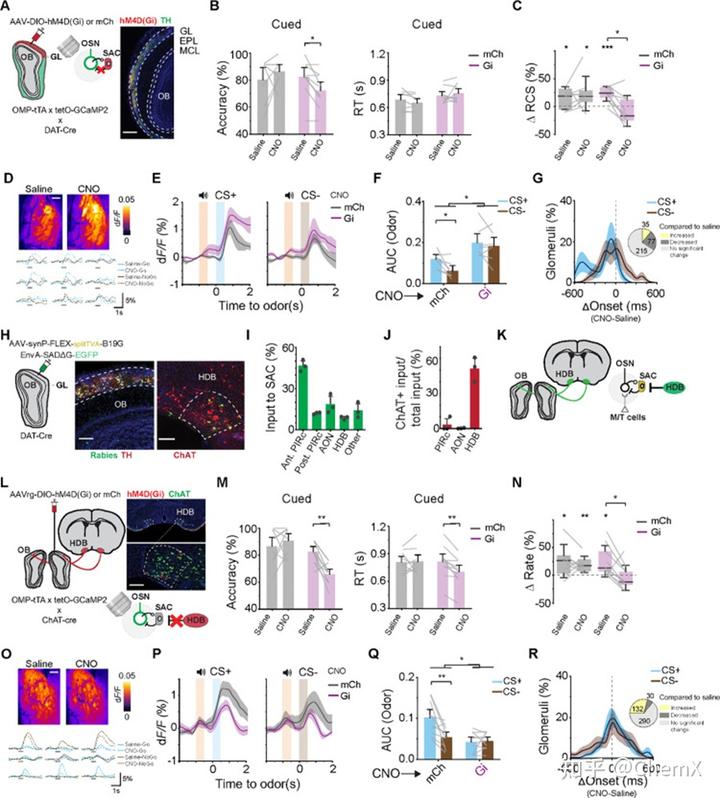
放到桂花这个场景,我觉得还有一个更朴素的解释:
如果刻意去闻,是在做“有还是没有”的判断;无意间闻到,是在做“变化检测”。 前者标准更严,后者更宽松。
注意、预期、状态,都会影响你对气味的敏感度。
总而言之,桂花香不是非牛顿流体。
它是一个很妙的说法,你越想要,它越躲,你一松手,它又回来。
但体验背后的原因,不是非牛顿流体的黏度,而是增益。
是你的受体在脱敏,是你的大脑在调低音量,是你的鼻子在采样,是风把气味撕成一团一团,是你在主动在寻觅它......
下一次路过桂花树,你可以试着别主动找它。
正如,众里寻她千百度。蓦然回首,那人却在,灯火阑珊处。